細菌の集団運動を担うべん毛は、糖鎖修飾を受けていた!
ビブリオ属菌の解析から解明、細菌感染症の予防や治療開発へ知見
| 原著論文 | mBio, 2026 |
|---|---|
| 論文タイトル | Structural characterization of a pseudaminic acid-modified lateral flagellar filament from Vibrio alginolyticus |
| 研究室サイト | 日本電子YOKOGUSHI協働研究所〈難波 啓一 特任教授(常勤)〉 |
概要
名古屋大学理学研究科の小嶋 誠司 教授、本間 道夫 名誉教授、大阪大学大学院生命機能研究科の木下 実紀 特任助教(常勤)、南野 徹 准教授(現国立遺伝学研究所・教授)、難波 啓一 特任教授(常勤)、名古屋大学工学研究科の中谷 肇 講師、鈴木 淳巨 准教授、名古屋大学トランスフォーマティブ生命分子研究所の三城 恵美 特任講師、大阪大学蛋白質研究所の高尾 敏文 特任教授は、海洋性ビブリオ菌の遊走運動を支える側べん毛を形成する蛋白質LafAが糖鎖修飾を受けることを明らかにしました。
病原細菌を含む多くの運動性細菌は、べん毛とよばれる細胞外に長く伸びたらせん繊維状の運動器官を回転させて運動します。べん毛は液体中を泳ぐ(遊泳)際に使われるだけでなく、固体表面を這うような運動(遊走)を行う際にも用いられます。遊走は、隣り合う細菌同士や固体表面と作用しながら進む複雑な運動であるため、遊泳に比べて遊走の仕組みは未だ謎に包まれています。本研究では、側べん毛による明瞭な遊走を示す海洋性ビブリオ菌を対象とし、側べん毛の繊維構造と特徴をクライオ電子顕微鏡による構造解析と質量分析を組み合わせて解き明かしました。その結果、側べん毛を構成するLafA蛋白質はべん毛繊維形成のコアとなるD0-D1ドメインのみを持ち、べん毛表面に露出したD1ドメインの5つのセリン残基が糖鎖修飾を受けていること、この糖鎖修飾を担うと予測される遺伝子を破壊するとべん毛繊維形成が阻害されることが分かりました。
本成果は、ビブリオ属菌の遊走を担う側べん毛が糖鎖修飾を受けていることを示す初めての報告であり、遊走と糖鎖修飾の関係を明らかにすることで、病原細菌の遊走を制御する新薬や方法の開発につながると期待されます。
研究背景と内容
生命現象の根幹を担うタンパク質は、細胞内で合成された後にさまざまな化学修飾を受けることが知られています。糖鎖修飾はその一つで、動物ではタンパク質の糖鎖修飾は広く知られており、さまざまな生命現象に広く関わっています。その一方で、たった一つの細胞から成る細菌では、タンパク質の糖鎖修飾はないと一時考えられていました。近年研究が進み、線毛やべん毛繊維といった、細菌の外側に形成される器官を構成するタンパク質において糖鎖修飾が見つかり、病原細菌の感染において重要な役割を果たすことが明らかになってきました。
運動能を持つ多くの細菌は、べん毛を運動装置として用い、溶液中を自由に泳ぎ回ったり(遊泳)、固体表面を這う(遊走)ことができます。べん毛は菌体外に長く伸びた螺旋(らせん)状の繊維で、根元の細胞表層に埋まったモーターが細胞膜を介したイオン駆動力によって回転すると、菌体は繊維を介し推進力を得て運動します。古くから研究が進められた遊泳に比べて、遊走は限られた条件と細菌で見つかってきていることもあり、研究が進んでおらずその仕組みは謎に包まれています。遊走は、栄養が豊富かつ湿り気のある表面において、細菌が集団となって成立する運動です。そのため、集団内で細菌同士が密にせめぎあう中、菌体からの分泌物と固体表面上の水分を使ってべん毛の束を回転させ、遊泳時に比べて高い推進力を得ていると考えられています。
海洋性ビブリオ菌は、固い培地の表面で培養すると円筒形の細胞の側面に遊走を担う側べん毛が多数形成されます(図1A)。実験室において、寒天プレート上で再現性よく遊走を示すことから、遊走のモデル生物として多くの研究者に用いられてきました。海洋性ビブリオ菌の側べん毛は、LafAと呼ばれる単一の繊維構成蛋白質(フラジェリン)で構成されることが分かっています。ゲノム解析の結果、興味深いことにlafA 遺伝子のすぐ隣に糖転移酵素と高い相同性を示すmaf 遺伝子が存在し(図1B)、LafAがMafにより糖鎖修飾を受ける可能性が考えられました。
そこで本研究グループはクライオ電子顕微鏡による構造解析と質量分析を組み合わせたアプローチにより、側べん毛繊維の構造解析から遊走のメカニズム解明に挑みました。側べん毛を単離精製し、クライオ電子顕微鏡により2.4 Åの分解能で構造を決定することができました(図2A, B)。LafAは小さいフラジェリンで、繊維のコアとなる部分であるD0-D1ドメインのみを持ち(図2C)、その構造はサルモネラ菌のフラジェリンであるFliCのD0-D1ドメインと非常によく似ていました。このことは、べん毛繊維の基本構造は異なる菌種でもよく保存されていることを示しています。
興味深いことに、クライオ電子顕微鏡の構造解析から、LafAのD1ドメインの表面に存在する5つのセリン残基に、追加の密度があることが分かりました。そこで繊維から単離したLafAを質量分析で調べたところ、これらセリン残基はシューダミン酸(pseudaminic acid)の修飾を受けていることが明らかとなり、追加の電子密度にシューダミン酸がうまく当てはまることが分かりました(図2D)。
この糖鎖修飾がlafA 遺伝子の隣にコードされるmaf 遺伝子産物により行われる可能性を検討するため、mafを欠失させた菌株を作成したところ、maf を持たない株では側べん毛の形成が見られず、遊泳と遊走が完全に失われることが分かりました。以上の結果から、海洋性ビブリオ菌の遊走を担う側べん毛の形成には、Mafが必須であることが明らかとなりました。現在のモデルを図3に示します。
研究成果のポイント
- 遊走運動を担う海洋性ビブリオ菌の側べん毛繊維の構造をクライオ電子顕微鏡を用いて2.4 Å(オングストローム)の解像度で決定し、分子モデルを構築した。
- 側べん毛繊維蛋白質LafAは他のべん毛繊維蛋白質フラジェリンに比べて小さく、繊維のコアを構成する保存されたD0-D1ドメインのみを持つことで他のべん毛より細い。
- 質量分析により、べん毛繊維構造表面を形成するD1ドメインの表面に存在する5つのセリン残基がシューダミン酸による単糖修飾を受けていることを発見。
- lafA 遺伝子のすぐ隣にある糖鎖転移酵素と高い相同性を示すmaf 遺伝子を欠失させると、側べん毛繊維形成が阻害されることを発見。
本研究成果が社会に与える影響(本研究成果の意義)
遊走は、モデル細菌の大腸菌やサルモネラ菌では限られた条件でのみ見出されるため、研究があまり進んでいませんでした。本研究では、海洋性ビブリオ菌の遊走を担う側べん毛が糖鎖修飾を受けること、側べん毛形成にはMafが必須であることを世界で初めて示しました。海洋性ビブリオの近縁種で、食中毒の原因菌である腸炎ビブリオも遊走することが知られています。本研究の知見をもとに、Mafを直接ターゲットとした、細菌感染症の予防や治療に効果のある新薬開発が期待されます。今後はMafがLafAを糖鎖修飾するのか、側べん毛形成のどの段階で糖鎖修飾が鍵となるのか、側べん毛繊維の糖鎖は遊走にどんな影響を及ぼすのか、などを明らかにしていきます。また、遊走と遊泳はともにべん毛装置を用いるため、より高い推進力を得る仕組みを明らかにできれば、エネルギー変換機構の多様性をより深く理解することにもつながります。
特記事項
本研究成果は、2026年11月2日付で国際学術雑誌「mBio」に掲載されました。
なお、本研究は、科研費 基盤研究B(JP23K27140), 基盤研究C(JP24K09393), AMED-BINDS(JP23am121003, JP24am121003, JP25am121003), 大阪大学日本電子YOKOGUSHI協働研究所の支援のもとで行われたものです。
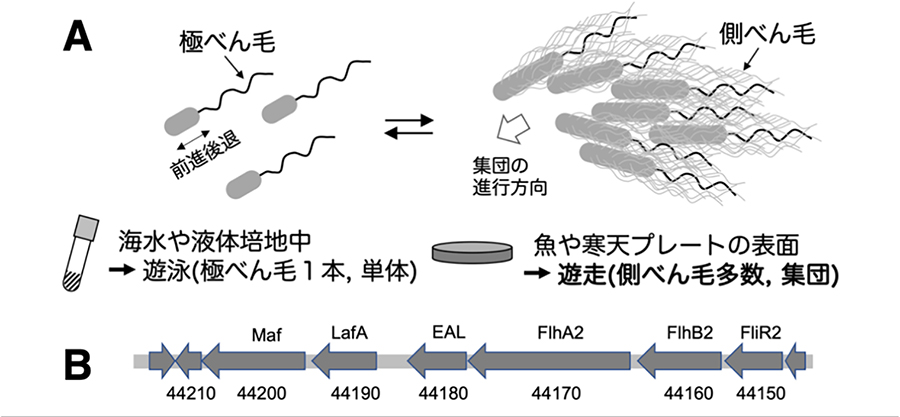
図1 海洋性ビブリオ菌の遊走とlafA 遺伝子部位
A: ビブリオ菌は液体中では極べん毛を1本生やして遊泳するが、表面では多数の側べん毛を形成し集団で動く「遊走」を示す。B: 染色体上で、lafA 遺伝子の隣に推定糖転移酵素のmaf 遺伝子が存在する。
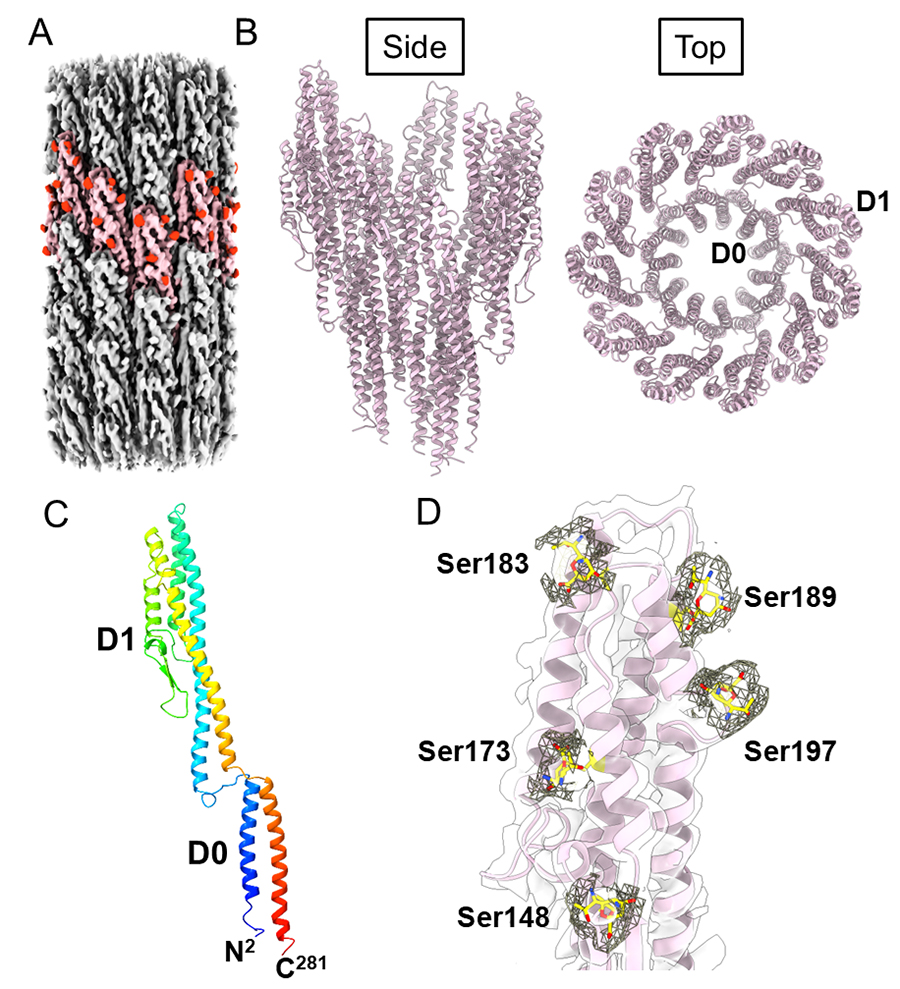
図2 側べん毛繊維のクライオ電子顕微鏡構造
A: クライオ電子顕微鏡の電子密度マップを横から見た図。赤い部分は追加で見えた電子密度。B: 側べん毛繊維の原子構造を横と上から見た図。α炭素をリボンモデルで示した。C: LafA分子の原子構造モデル。N末端を青、C末端を赤で示した。D: LafA D1ドメインの表面に存在する糖鎖修飾された5つのセリン残基。シューダミン酸を追加の電子密度に当てはめている。
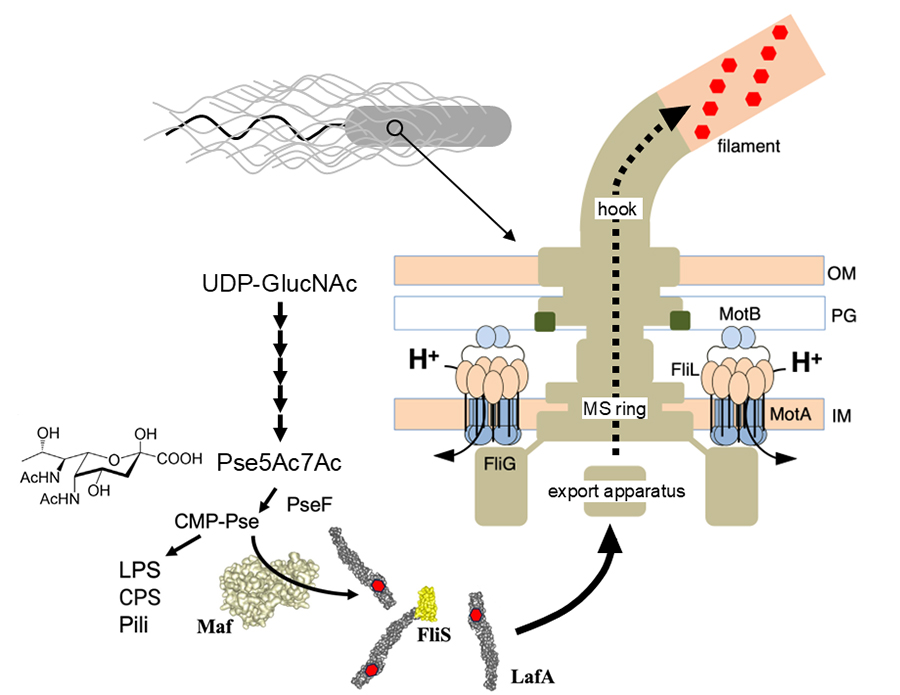
図3 Mafに依存した側べん毛形成過程のモデル
ビブリオ菌の細胞質でシューダミン酸が生合成されると、MafによりLafAの5つのセリン残基にO-グリコシド化で修飾が起きる。修飾を受けたLafAはべん毛特異的輸送装置(export apparatus)を介して輸送され、伸長中のべん毛先端で重合を続けることで繊維が形成される。
用語解説
- 遊走運動
細菌が固体表面を移動する際の運動様式の一つ。べん毛を運動装置として用い、表面を這うように進む。モデル細菌の大腸菌やサルモネラ菌も、ある特殊な環境に置くと遊走を示すことが知られている。遊走は栄養が豊富かつ湿り気のある表面において、細胞が集団となることで可能となる。遊走時には集団内で細胞同士が密に相互作用しており、菌体外にsurfactant(界面活性剤)を分泌して体の側に多数形成したべん毛の束を回転させ、推進力を得ている。これに対し、液体中を1個体が泳いでいる場合は「遊泳」とよぶ。 - べん毛
多くの運動性細菌が持つ、細胞表面から突出した巨大な螺旋(らせん)状の繊維を持つ運動器官。細胞外に存在する「べん毛繊維」、細胞表層に埋まった複数のリング構造からなるトルク産生や回転方向の決定に関わる「モーター」、モーターとべん毛繊維をつなぐ「フック」の3種類の部位に分けられる。ATPで駆動する真核細胞の鞭毛とは異なり、細胞膜を介したイオンの電気化学勾配をエネルギー源とする。 - クライオ電子顕微鏡
細胞やタンパク質などの生体試料を、染色剤を加えずに液体エタン等で急速凍結させることで本来の状態や形を保ったまま高い分解能で観察する手法。試料に電子線を照射してコントラストをつけることで原子や分子の大きさに相当する極めて小さなスケールの世界を観察できる。タンパク質の構造解析では、さまざまな角度を持つ試料の投影像を大量に得て、画像解析によりクラス分けした平均像から3次元の最終構造情報へと導く手法が用いられる。 - フラジェリン
べん毛の繊維部分を構成する蛋白質を総称してフラジェリンと呼ぶ。その立体構造はサルモネラのフラジェリン(FliC)で最初に明らかになった。繊維の内側の核をなす部分であるD0-D1ドメインの構造は菌種を超えよく保存されている。繊維の表面を構成するD2-D3ドメインは菌種によって異なり、宿主の免疫応答によって認識される主要な部位になっている。 - シューダミン酸
英語名はPseudaminic acid、9つの炭素を持つシアル酸の誘導体で、細菌にのみ見られる。LafAの場合、セリン残基の側鎖にあるヒドロキシ基にO-グリコシル化修飾によって結合している。胃がんの原因菌として知られるピロリ菌のフラジェリンもシューダミン酸で修飾されている。
| 原著論文 | mBio, 2026 |
|---|---|
| 論文タイトル | Structural characterization of a pseudaminic acid-modified lateral flagellar filament from Vibrio alginolyticus |
| 著者 | Miki Kinoshita (1, 2), Tohru Minamino (1), Hajime Nakatani (3), Atsuo Suzuki (3), Toshifumi Takao (4), Emi Mishiro-Sato (5), Seiji Kojima (6), Keiichi Namba (1, 2), Michio Homma (7)
|
| PubMed | 42969340 |


